Tradutor

sábado, 27 de maio de 2023

TOMO LIX PALEOZOICO- PERÍODO SILURIANO - A ORIGEM DA MANDIBULA


Gnatostomados (o Desenvolvimento da Mandíbula)


O início do Período Siluriano foi quando os vertebrados de mandíbula começaram a se diversificar rapidamente, mas poucos restos destes peixes foram encontrados.

Na verdade, a maioria das evidências sugere que peixes sem mandíbula eram muito mais comuns nesta época e que os gnastomados surgiram dentro da irradiação dos ágnatos comprovada em registros fósseis, não apenas na posse de maxilas, mas também em muitos outros aspectos. Dos fósseis de peixes de mandíbula descobertos, muito poucos têm qualquer característica óssea, pois a maioria é cartilaginosa, semelhante aos tubarões e raias modernas.

Tradicionalmente, a diferença entre gnatostomados e ágnatos é descrita como os primeiros possuindo maxilas, que apresentam dentes na maioria das formas além de dois conjuntos de apêndices ou nadadeiras pares (peitorais e pélvicas) na maior parte dos elementos.

Com maxilas que podem agarrar presas, e músculos que produzem uma sucção poderosa, o estágio para entrar em um novo domínio de alimentação foi alcançado pelos gnatostomados - atacando presas grandes, que nadavam ativamente. São bem conhecidos fósseis e assim esses peixes puderam ser divididos em quatro ciados distintos:

Dois grupos extintos - Placodermos e Acantódios –

Dois grupos que sobrevivem atualmente - Condrictes (peixes cartilaginosos) e Osteítes (vertebrados ósseos).


Evolução das maxilas dos Vertebrados a partir dos arcos branquiais mais craniais. As barras indicam elementos do esplancnocrânio (arcos branquiais e seus derivados).

O plano do corpo dos gnatostomados revela que eles são caracterizados por muitos outros aspectos, o que implica representam um passo básico mais elevado nos níveis de atividade e de complexidade a partir de vertebrados ágnatos. 

Estes aspectos incluem progressos nas capacidades locomotoras e predatórias, e nos sistemas sensorial e circulatório. Assim como a transição de Cordata não vertebrados para vertebrados foi caracterizada por uma duplicação do complexo do gene Hox, a transição entre vertebrados ágnatos para gnatostomados pode ter envolvido um segundo evento de duplicação do gene poderia ter resultado em uma maior quantidade de material genético, talvez necessário para construir um tipo mais complexo de animal.

As maxilas dos gnatostomados em geral possuem dentes, mas evoluíram depois que as maxilas estavam no lugar, o grupo basal Placodermos não possuíam dentes no siluriano, apesar do grupo já quase em seu final acabou desenvolvendo dentes, mas de forma paralela aos grupos atuais.

A irradiação de peixes com maxilas, a primeira conhecida em detalhes a partir do registro fóssil do Siluriano Superior, incluiu quatro grupos principais. Dois grupos, os condrictes (peixes cartilaginosos) e as osteítes (peixes ósseos) sobrevivem até hoje.

Os Placodermos foram peixes com armadura, superficialmente semelhantes aos Ostracodermos em seu aspecto. Eram peixes altamente especializados, mas parecem ser mais primitivos do que todos os outros gnatostomados quanto a certos aspectos. Mas nos últimos exemplares destes peixes já teriam evoluído dentes verdadeiros de modo independente aos dos outros grupos. 

Os Condrictes surgiram ainda no Ordoviciano médios cartilaginosos, que incluem tubarões, raias e quimeras, evoluíram especializações distintivas da armadura dérmica, calcificação interna, mobilidade das maxilas e nadadeiras, além da reprodução.

Os acantoides eram peixes mais diversificados, provavelmente formando o táxon irmão das osteítes. Eles tinham a característica peculiar de possuírem múltiplas nadadeiras ventrais em vez do complemento usual dos gnatostomados a existência de duas nadadeiras pares, as nadadeiras peitorais e pélvicas. Os acantódios e os peixes ósseos podem ser aparentados próximos e, algumas vezes, são agrupados como teleósteos.

As osteítes desenvolveram osso endocondral, um esqueleto cefálico dérmico distintivo que incluía um opérculo recobrindo as brânquias, e um saco aéreo interno à bexiga natatória.

Os peixes ósseos incluem os peixes de nadadeiras raiadas (actinopterígios), que compreendem a maioria dos peixes viventes, e os peixes de nadadeiras lobadas (sarcopterígios). Somente alguns poucos peixes de nadadeiras lobadas sobrevivem hoje em dia (como os peixes pulmonados e os Celacantos), e constituíram o grupo que originou os tetrápodes.

No clado apropriado, os Osteítes incluem os tetrápodes. Os peixes ósseos constituem por si só um grupo parafilético porque seu ancestral comum também é o ancestral dos tetrápodes, e o mesmo é verdadeiro para os Sarcopterygii (peixes com nadadeiras lobadas).


Os Sarcopterygii como o peixe Pulmonado Australiano e um fóssil vivo o Celacantos


A Estruturação do Crânio e Dentes


Há abundância de peixes do Siluriano revelam a ascensão dos vertebrados com mandíbulas. Mas os dentes devem ter evoluído depois que as maxilas estavam no lugar, porque os primeiros membros dos peixes gnatostomados os Placodermos, não tinham dentes embutidos nos ossos das maxilas.

 Peixes ósseos e tetrápodes posteriormente possuíam dentes, mas, no entanto, porque os dentes se formam a partir de uma papila dérmica, eles só podem estar embutidos em ossos dérmicos. Os peixes cartilaginosos, tais como tubarões e raias, perderam os ossos dérmicos e seus dentes se formam no interior da pele resultando em uma espiral de dentes que está sobre as maxilas, mas atualmente não está embutida nelas.

 Essa condição é provavelmente base para todos os gnatostomados mais não derivados do que Placodermos, porque ela também é observada nos acantódios extintos que são o grupo irmão dos peixes ósseos.

quarta-feira, 19 de abril de 2023

TOMO LIX PALEOZOICO- PERÍODO SILURIANO - AGNATOS

 Peixes Silurianos:

Anáspidas ("sem escudo")


Os Anaspídas eram peixes carecem das extensas placas ósseas mas sem mandíbula como seus primos Ostracodermos. Sendo classicamente concebidos como antecessores das lampreias. Possuíam um corpo coberto de escamas comprimido lateralmente. Eles se desenvolveram do Siluriano Inferior ao Siluriano Superior, e estão limitadas as áreas da América e Europa. Todos eram de pequenas dimensões, com cerca de 10 ou 15 cm de comprimento.

Os Anaspídas eram todos vertebrados com um corpo estreito, caracterizados por espinhos pós-branquiais trirradiados. Eles possuem escamas do corpo em forma de bastão (quando não estão nus), grandes escamas ou escudos dorsais medianos, barbatanas pares de base larga e uma cauda fortemente hipocercal (lobada para baixo). Seu exoesqueleto (escamas, placas dérmicas) é composto de osso acelular (aspidina). Eles não deveriam ser bons nadadores, já que não tinham as nadadeiras estabilizadoras básicas de seus membros.

Uma fileira de escamas com crista corria ao longo das costas, e um par de espinhos ósseos projetava-se da área peitoral. Havia uma barbatana anal bem desenvolvida e a cauda estava virada para baixo. Mas nenhuma dessas características teria estabilizado o corpo desses animais na água. É bem possível, no entanto, que as pequenas barbatanas emparelhadas em formas fossem onduladas como um dispositivo de deslocamento lento para fornecer estabilização.


Jamoytius kerwoodi


O peixe possuía um corpo alongado e acredita-se que tivesse uma barbatana dorsal e uma barbatana anal perto do terço posterior de seu corpo. Em vida, J. kerwoodi parecia uma lampreia de boca muito pequena. Como o fóssil não tinha dentes ou estruturas semelhantes a dentes, nem sugestões de qualquer um em sua boca, se acredita não carnívoro como muitas lampreias modernas. Era mais provável que fosse um filtrador ou um alimentador de detritos, possivelmente à maneira de larvas de lampreias.

Pterygolepis nitidus


Pterygolepis nitidus

Fora um peixe ágnato anaspídeo que não possuía mandíbulas, que viveu no Siluriano, já tinha um cérebro mais complexo  e protegido por um crânio, o corpo destes ágnatos já era suportado por uma espinha dorsal composta por vértebras.


 Ostracodermos do Siluriano


Os ostracodermos são agnatos de um grupo parafilético dos agnatos atuais.


Eles apresentavam ossos dérmicos; e impressões na face interna do escudo cefálico dorsal sugerem que possuíam um trato olfatório conectando o bulbo olfatório com o prosencéfalo, além de terem um cerebelo no rombencéfalo.

Os agnatos viventes não possuem cerebelo e seus bulbos olfatórios estão incorporados junto com o restante do prosencéfalo em vez de estarem localizados mais na frente e ligados à cabeça via trato olfatório ou nervo craniano.


Um anaspídeo (Cephalaspida), e dois Thelodontes.


Os Ostracodermes variavam em comprimento desde cerca de 10 centímetros até mais do que 50 centímetros. Embora não tivessem tido maxilas, aparentemente alguns possuíam diversos tipos de placas orais móveis e, em qualquer vertebrado vivente, não há análogas destas. Estas placas eram dispostas em tomo de uma pequena boca circular que parecia estar localizada mais na frente na cabeça do que uma boca maior capaz de se abrir muito dos vertebrados gnatostomados.Talvez esses agnatos fossem filtradores, mas algumas espécies provavelmente se alimentavam de presas de pequeno tamanho e corpo mole.

 Até bem recentemente, nossa evidência mais antiga de vertebrados consistia de fragmentos da armadura dérmica dos vertebrados agnatos conhecidos como ostracodermos. Estes animais eram muito diferentes de qualquer vertebrado que vive atualmente. Essencialmente, eram peixes encerrados numa armadura óssea (grego ostrac = casca e derm = pele), bem diferentes dos vertebrados agnatos viventes que perderam completamente os ossos.

Fragmentos de ossos são conhecidos do Ordoviciano, há cerca de 480 milhões de anos. Isso foi mais ou menos 80 milhões de anos antes que fósseis inteiros de vertebrados se tomassem abundantes no Siluriano Superior. Entre o Siluriano Superior e o Devoniano, a maioria dos principais grupos conhecidos de agnatos extintos coexistiu com os primeiros gnatostomados. Aproximadamente 50 milhões de anos de coexistência fazem com que seja altamente improvável que os ostracodermes fossem levados à extinção pela irradiação dos gnatostomados. Representavam dois diferentes tipos básicos de animais, explorando diferentes tipos de recursos.


Cephalaspis


Cephalaspis é um gênero de peixes primitivos que viveram no período Siluriano. Seus fósseis foram encontrados em diferentes partes da Europa Ocidental. Mediam em torno de 50 centímetros e acredita-se que eram animais detritívoros. Cephalaspis era um peixe comum em seu período, sendo um agnata. Possuía  escamas grossas bem como um escudo ósseo no crânio. Sua cabeça é o motivo de seu nome (Cephalaspis significa "cabeça de escudo"). Possivelmente seriam ancestrais dos Placodermos.


Galeaspida

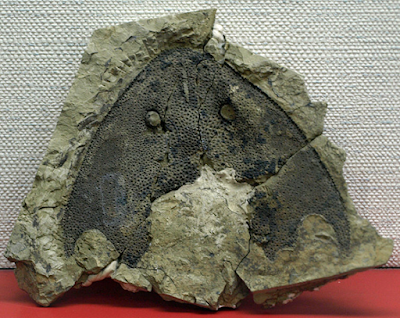
Os Galeaspida ("Elmos couraçados") foram peixes ágnatas que não possuíam mandíbulas e viveram em águas rasas e frescas das regiões costeiras entre os períodos Siluriano e Devoniano (430 a 370 milhões de anos atrás) entre o que hoje vai ente a China, Tibet e o Vietnã.


Possuiam um cérebro complexo protegido por um crânio bem estruturado suportado por uma espinha dorsal composta por vértebras. Provavelmente graças a um cerebro melhor desenvolvido ele pode superar em parte a predação com uma memória. Isso o fez migrar do mar para os rios e lagos onde era mais seguro para a desova e o crescimento dos alevinos.


Disparidade morfológica da crista dorsal mediana e espinha em galeaspids

nas vistas anterolateral (A1, B1, C1) e lateral (A2, B2, C2).

A. Polybranchiaspis liaojiaoshanensis; B. Siyingia altuspinosa;

C. Altigibbaspis huiqingae. Abreviaturas como nas Figs. 2, 3 (sem escala).


A característica definidora de todos os galeaspídeos era uma grande abertura na superfície dorsal do escudo da cabeça, que estava conectada à faringe e câmara branquial, e um padrão recortado das linhas sensoriais. Essa abertura parece ter servido tanto ao olfato quanto à ingestão da água respiratória semelhante ao ducto nasofaríngeo dos atuais peixes-bruxa .

Os Galeaspidas também são os vertebrados que possuem o maior número de brânquias podendo algumas espécies tinham até 45 aberturas branquiais. O corpo é coberto de escamas diminutas dispostas em fileiras oblíquas e não há outra nadadeira além da nadadeira caudal . A boca e as aberturas branquiais estão situadas na região ventral lado da cabeça,

Hanyangaspis


A boca e aberturas branquiais se situavam na superfície ventral da cabeça que é achatado e sugere que tinham hábitos bentônicos. Nas formas mais primitivas como o Hanyangaspis, a abertura dorsal mediana do inalador é ampla e situada anteriormente. Em outros galeaspídeos, é mais posterior na posição e pode ser oval, arredondado, em forma de coração ou em forma de fenda.


Sanchaspis(E) e Eugaleaspis(D).


Em alguns galeaspidas do Devoniano como o Sanchaspis , o escudo é produzido lateralmente e anteriormente em processos delgados. Algumas espécies como os Os eugaleaspidiformes , como Eugaleaspis,  possuiam um escudo em forma de ferradura e uma abertura dorsal mediana em forma de fenda, que imita o aspecto do escudo de cabeça dos ostracodermos.


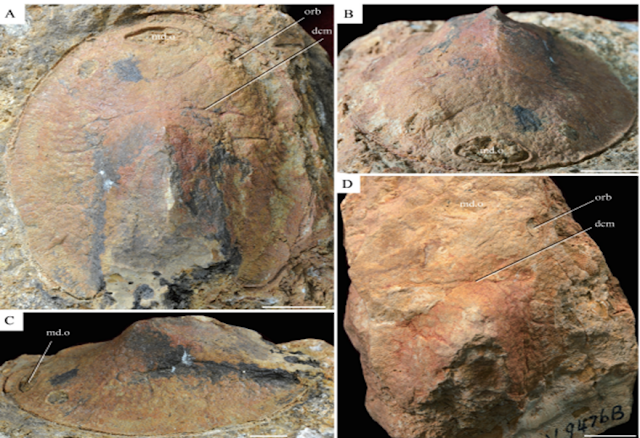
Fosseis (A−B) e reconstrução (C−D) do Nanpanaspis microculus


Fosseis (A−D) e reconstrução (E−F) do Eugaleaspis changi


Fosseis de um Altigibbaspis huiqingae. Uma Couraça completa, holótipo, IVPP V 20843.1 nas vistas dorsal (A), frontal (B) e lateral (C); um escudo de cabeça incompleto, parátipo, V 20843.2 em vista dorsal (D), barras de escala = 1 cmbaspis huiqingae.


Vida Bentônica

A-      Uma moderna arraia usando seu espiráculo para a ingestão de água respiratória quando enterrada na areia;

B-         O moderno peixe-bruxa do Pacífico usando seu duto nasofaríngeo para a ingestão de água respiratória quando enterrado na lama; ;

C.-      Um pteraspídeo heterostracano Doryaspis provavelmente usando sua boca dorsal para a ingestão de água respiratória quando enterrado na areia;

 D-     O anfiaspídeo heterostracano Kureykaspis utilizando sua abertura do adorbital para a ingestão de água respiratória quando enterrado na areia;

E, F.-     Um gumuaspid galeaspid Platylomaspis usando sua abertura dorsal mediana (narina) para a ingestão de água respiratória quando enterrado na areia (B–F ilustrado Dinghua Yang).

 Abreviaturas: ad.o, abertura adorativa; br.o, abertura branquial externa comum; m, boca; md.o, abertura dorsal mediana; na.p, ducto nasofaríngeo; orbe, abertura orbital; ro, processo rostral; sl.b, aba lateral serrilhada; espi, espiráculo.


terça-feira, 18 de abril de 2023

TOMO LIX PALEOZOICO- PERÍODO SILURIANO - A MARCHA DOS VERTEBRADOS

A Marcha dos Vertebrados

Conodontes

Depois da Extinção do Silúrico-ordovício, que fora uma das maiores extinção em massa geológica da Terra, muitos nichos ecológicos prosperaram ocupando o lugar daqueles que diminuíram em numero de espécimes ou foram extintos. Entre eles estão os vertebrados como os conodontes e os agnatos. Mas não foram somente os vertebrados sem mandíbulas que prosperariam, os mandibulados surgem no final do período com força e praticamente todos os grupos de peixes que existiram no planeta entram em cena no teatro da vida.

Os conodontes continuam se desenvolvendo paralelamente aos seus descendentes como os agnatos ostracodermos depois de surgirem entre o final do Cambriano e o inicio do Ordoviciano. A aceitação dos conodontes como vertebrados modificou nossas idéias sobre as relações entre os primeiros Vertebrada, particularmente a importância - na hierarquia evolutiva – de possuir tecidos mineralizados. As estruturas semelhantes a dentes dos conodontes e esqueletos ósseos dérmicos de ostracodermos são os motivos para considerar estes animais como tipos mais derivados de vertebrados do que os peixes agnatos, de corpo mole, que vivem atualmente.

Os conodontes parecem ter tido uma notocorda, um crânio, miômeros, raios de nadadeira e grandes olhos, há evidências de músculos oculares extrínsecos para mover os olhos.

Embora a faringe possa ter sido muscular para operar o aparelho conodonte, não existem vestígios de fendas branquiais. No entanto, com seu tamanho muito pequeno (40 milímetros de comprimento), a respiração pode ter sido realizada por difusão de gases pela superfície do corpo.

Assim, assumindo que seus ancestrais (como vertebrados verdadeiros)  possuíssem brânquias, estas estruturas podem ter sido desnecessárias para os diminutos conodontes e, portanto, foram perdidas.


Conodontes. (a) Clydagnathus. (b) Detalhe do aparelho do aparelho

usado na alimentação (elementos conodontes) no interior da

cabeça de Idiognathus. Os elementos S, mais craniais, parecem

designados para agarrar e os elementos P, mais caudais, parecem ser

designados para quebrar.


Durante o Siluriano Superior, os ostracodermos e os primeiros peixes com maxilas se tornaram  abundantes tanto em ambientes de água doce como marinhos. Sob quais condições evoluíram os primeiros vertebrados?

Originalmente, os pesquisadores supunham que os vertebrados teriam surgido na água doce. Essa opinião se baseou no rim dos vertebrados que é claramente

vantajoso neste habitat, atuando na rápida eliminação do excesso de água que entra no corpo por osmose. No entanto, agora se aceita amplamente uma origem marinha dos vertebrados; considera-se que, por acaso, o rim foi preadaptado para esta função na água doce em vez de ter evoluído especificamente para este propósito.


Larva de lampreia moderna


A primeira linha de evidência para uma origem marinha dos vertebrados é paleontológica - os primeiros fósseis de vertebrados são encontrados em sedimentos marinhos.

 A segunda linha de evidência provém da fisiologia comparada -todos os cordados não-vertebrados e os filos de invertebrados deuterostômios são exclusivamente formas marinhas, tendo a mesma concentração dos líquidos do corpo como a de seu ambiente.

 Assim, os líquidos concentrados do corpo das feiticeiras muito primitivas provavelmente representam a condição original dos vertebrados.


segunda-feira, 17 de abril de 2023

TOMO LIX PALEOZOICO- PERÍODO SILURIANO - INVERTEBRADOS DO SILURIANO PARTE-4


Equinodermos do Siluriano


O período Siluriano depois do Ordoviciano fora o que mais teve representantes dos grupos de equinodermos conhecidos que existiram no teatro geológico do planeta.


Possível arvore evolucionaria dos Equinodermos até as classes modernas.


Aethocrinea

Aethocrinus Moroei


A subclasse Aethocrinea  só existiu do período Ordoviciano inferior a médio se extinguindo antes da grande extinção do Ordovício-silúrico. Constituíam de animais semelhantes aos crinoides, só que mais primitivos. Um grupo parafilético a partir do qual todos os outros crinoides teriam evoluído.

Apresentam arranjo aboral tricíclico, placas do cálice bem suturadas com braquíolos proximais livres ou parcialmente incorporados ao cálice e tegmento com placas não rígidas; estruturas porosas podiam estar presentes ou não dependendo da espécie.

A boca provavelmente subtegmentar, e abertura anal através do tegmento. Possuiam braços unisseriais livres, ramificados, não pinulados e não perfurados bem como uma coluna tetrâmera ou pentâmera.

Eocrinoides


O grupo de Equinodermos Eocrinoides surgiram no Cambriano inferior. Conseguiu  sobreviver à extinção entre o Ordoviciano e o Siluriano mas saiu enfraquecido e não conseguiu passar para o próximo período Geológico.

Os Eocrinoides foram um grupo parafilético, onde tiveram sua origem no mesmo animal(grupo) que originou os  Crinoides, Blastoides e os Cistoides.


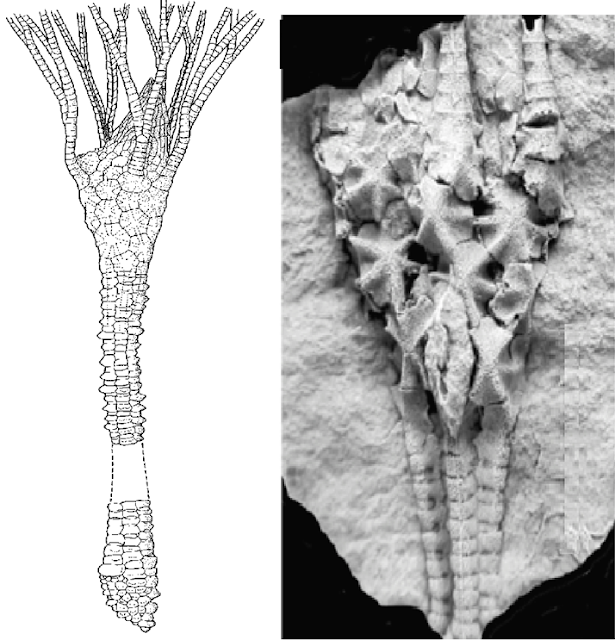
Fóssil de Sinoeocrinus


Crinoideos


Os crinoideos se diversificaram no siluriano enquanto os eocrinoides declinavam. Os crinoides que surgiram no Ordoviciano tiveram o seu clímax no Carbonífero, sendo hoje menos numerosos. As espécies viventes são cerca de 1000, enquanto as fósseis, descritas formalmente pela Paleontologia, chegam a cerca de 5000. As mais antigas datam do Cambriano.


Normalmente viviam(vivem) em águas profundas abisais do oceano, próximas ao litoral, livres na fase larval e sésseis na forma adulta, quando se fixam ao fundo do mar por meio de uma haste. O corpo principal é referido como o cálice, cuja superfície do aborto é cravejada de placas de carbonato de cálcio. Acima, há cinco ou mais pares de braços em forma de pena, dos quais o lírio do mar leva seu nome comum.


Estrutura dos Crinoides


Estes animais pentaradiados pouco modificaram sua estrutura ao longo de 400 milhões de anos. Têm a particularidade atual de viverem em condições de salinidade marinha típica.

 Reproduzem–se de forma sexuada por fecundação externa. Os crinóides se alimentam-se de organismos em suspensão na água. Os braços reúnem material orgânico nos cílios e o passam para a boca. Depois que os alimentos são digeridos no intestino em forma de U, os resíduos são ejetados pelo ânus, localizados ao lado da boca.

Apresentam um esqueleto interno formado por elementos carbonatados (ossículos).


Alguns crínóides crescem até um metro e meio de comprimento, mas a maioria é menor. Seu apse de desenvolvimento fora no Permiano (300-250 milhões de anos atrás), onde os crinóides floresceram com 600 espécies documentadas, mas apenas 80 espécies agrupadas em cinco famílias são conhecidas hoje.


Cidaroides


Os Cidaroides são uma ordem de ouriços-do-mar primitivos ainda existentes , a única ordem viva da subclasse Perischoechinoidea que surgiu no Siluriano. Todas as outras ordens desta subclasse, se extinguiu-se durante o mesozoico, à medida que os euequinóides mais avançados se tornaram comuns.

 A maioria das formas fósseis tinha múltiplas colunas de placas ambulacrais, em vez das duas fileiras encontradas em todas as espécies vivas de ouriço-do-mar. Os espinhos dos Cidaroideas são primitivos, muito mais separados do que em outros ouriços-do-mar, bem como placas relativamente simples da carapaça.

 Os Cidaroida também não tinham uma cintura perignática ao redor da boca, não possuindo fendas bucais e as placas ambulacrais continuando como uma série através da membrana que envolve a boca.


 Ofiuroides


Estrela Serpente.

 Surgida no Siluriano e presente até a atualidade, os ofiuroides prosperaram enquanto os Eucrinóides declinavam. Os ofiuróides possuem sulcos ambulacrais fechados pelo crescimento das placas laterais na região oral em direção à linha média dos braços.

 Vértebras quase cilíndricas, geralmente com articulações articulações compostas por diversos tipos de juntas que limitam os movimentos.

 Metades vertebrais opostas e unidas aos pares; placas ventrais e dorsais dos  braços  presentes  exceto  nas  formas  primitivas do siluriano.


Escudos radiais, placas genitais e escudos orais e adorais geralmente presentes; madreporita independente. O canal pétreo se abre no escudo oral.


Dactylochirotida


 Dactylochirotida fora uma ordem de Holoturoides(pepinos-do-mar) primitivos . Ao contrário de outros Holoturoides, seus tentáculos não são divididos em vários ramos, e o corpo é colocado dentro de uma estrutura flexível semelhante a uma concha. O Grupo não passou ileso pela extinção do Ordovício-Silúrico e entrou em declínio no siluriano e se extinguindo próximo ao fim do Devoniano.


Holoturoides Modernos